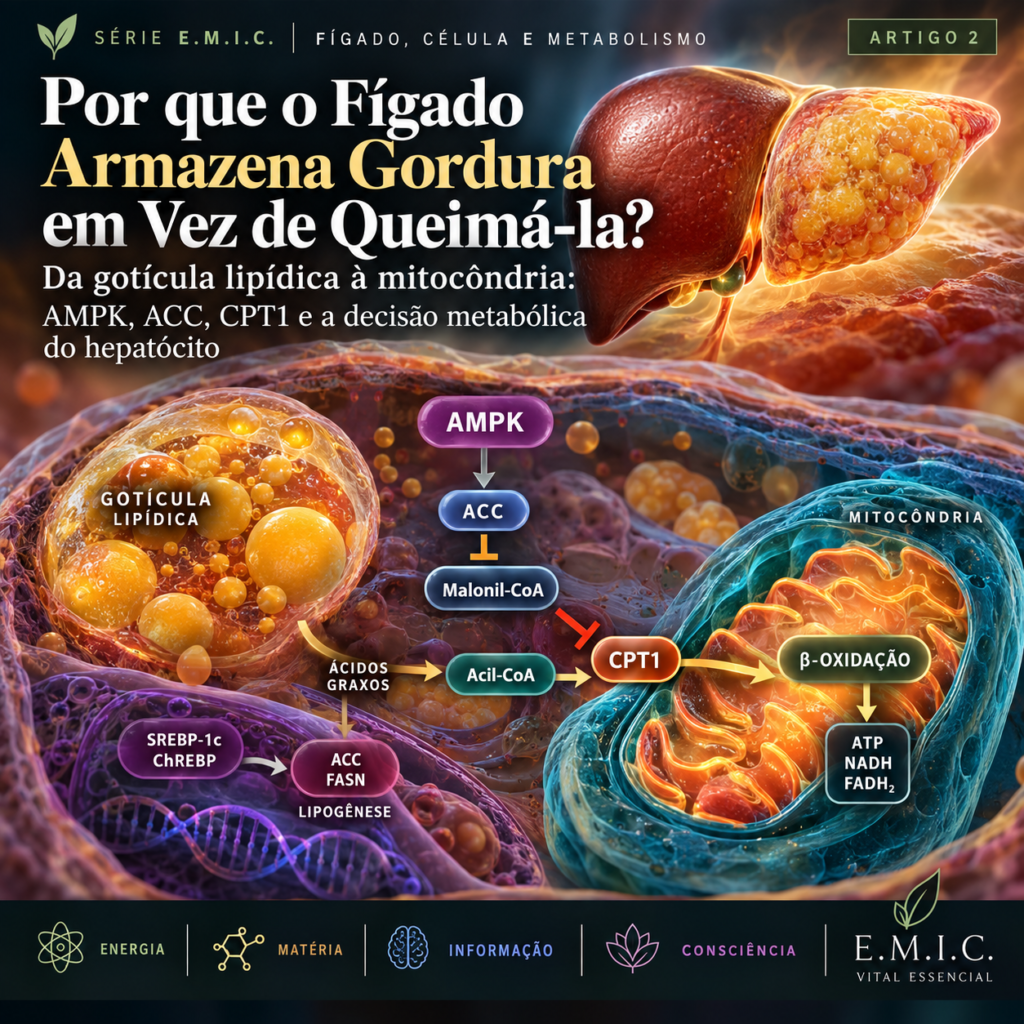
Da gotícula lipídica à mitocôndria: AMPK, ACC, CPT1 e a decisão metabólica do hepatócito
Série E.M.I.C. — Fígado, Célula e Metabolismo | Artigo 2
Por Simão Sirineu (Ney Hair)
No primeiro artigo desta série, eu acompanhei o caminho da alimentação até o interior do hepatócito para compreender como surge uma das primeiras estruturas envolvidas no acúmulo de gordura no fígado: a gotícula lipídica.
Agora quero avançar mais um passo.
Se o hepatócito possui mitocôndrias capazes de utilizar ácidos graxos para produção de energia, por que parte dessa gordura acaba sendo armazenada?
Essa pergunta me levou para dentro de uma rede bioquímica fascinante.
Foi nela que encontrei algumas das peças que considero fundamentais para compreender o metabolismo hepático: AMPK, ACC, malonil-CoA, CPT1, SREBP-1c, ChREBP, PPARα, mitocôndria e β-oxidação.
Esses nomes podem parecer complexos quando vistos isoladamente. Mas, quando organizamos cada elemento dentro da cascata, eles começam a contar uma história extremamente lógica.
A gordura não aparece no fígado por acaso. Antes de existir uma gotícula lipídica, existem decisões metabólicas acontecendo dentro da célula.
Antes de armazenar, a célula precisa decidir o destino dos ácidos graxos
Quando observo a esteatose hepática apenas como “gordura no fígado”, vejo o resultado final de um processo muito maior.
Antes daquele acúmulo existir, nutrientes foram ingeridos, digeridos e absorvidos. Moléculas circularam pelo organismo. O tecido adiposo armazenou ou liberou ácidos graxos. O fígado recebeu diferentes substratos e também pôde produzir novos ácidos graxos a partir do excesso de carbono disponível.
Quando esses ácidos graxos chegam ao hepatócito, eles não possuem um único destino.
Eles podem participar da formação de outros lipídios, ser armazenados na forma de triglicerídeos, ser exportados ou seguir para processos oxidativos capazes de contribuir para a produção de energia.
É justamente esse equilíbrio entre entrada, síntese, armazenamento, oxidação e exportação que me interessa compreender.
Do ácido graxo ao acil-CoA
Dentro da célula, o ácido graxo precisa ser metabolicamente ativado.
De maneira simplificada, posso representar esse primeiro movimento assim:
Ácido graxo → Acil-CoA
A partir daí, essa molécula passa a participar de diferentes rotas metabólicas.
Uma dessas rotas poderá conduzi-la à formação de triglicerídeos e, posteriormente, ao armazenamento em gotículas lipídicas.
Outra poderá levá-la em direção à mitocôndria, onde poderá participar da β-oxidação.
É nesse ponto que a investigação fica particularmente interessante.
O metabolismo não funciona como uma estrada de mão única. O hepatócito distribui continuamente moléculas entre diferentes vias de acordo com o estado energético, a disponibilidade de nutrientes, a sinalização hormonal, a atividade enzimática e suas próprias necessidades fisiológicas.
Por isso, dizer simplesmente que precisamos “queimar gordura” é insuficiente.
Eu quero saber como essa gordura chega à maquinaria responsável pela sua oxidação.
A porta de entrada para a mitocôndria
A mitocôndria ocupa uma posição central nessa história porque é nela que ocorre grande parte da oxidação dos ácidos graxos.
Entretanto, os ácidos graxos de cadeia longa ativados na forma de acil-CoA não atravessam livremente a membrana mitocondrial interna.
Existe um sistema específico para isso.
É aqui que encontro a CPT1 — Carnitina Palmitoiltransferase 1.
A CPT1 participa do sistema da carnitina e constitui um importante ponto de controle da entrada de ácidos graxos de cadeia longa na maquinaria mitocondrial.
De forma didática, posso visualizar:
Ácido graxo → Acil-CoA → CPT1 → sistema da carnitina → CPT2 → matriz mitocondrial → β-oxidação
Quando compreendi isso, surgiu imediatamente outra pergunta:
Se a CPT1 participa dessa porta de entrada, quem controla essa porta?
A resposta me levou ao malonil-CoA.
Malonil-CoA: uma molécula no cruzamento entre fabricar e oxidar gordura
O malonil-CoA possui uma posição extremamente interessante no metabolismo.
Ele participa da síntese de ácidos graxos, mas também funciona como importante regulador da CPT1.
Quando a concentração de malonil-CoA aumenta, a atividade da CPT1 pode ser inibida.
A consequência fisiológica dessa relação é importante:
Malonil-CoA elevado → inibição da CPT1 → menor entrada de determinados ácidos graxos de cadeia longa na mitocôndria → menor disponibilidade desses substratos para β-oxidação.
Isso revela uma lógica extraordinária da própria célula.
Quando o metabolismo está direcionando carbono para fabricar ácidos graxos, existe simultaneamente um mecanismo que reduz sua entrada imediata na mitocôndria para serem oxidados.
Síntese e oxidação, portanto, não são acontecimentos independentes.
Elas conversam molecularmente.
E essa conversa me levou à próxima peça da cascata.
ACC: de onde vem o malonil-CoA?
A ACC — Acetil-CoA Carboxilase catalisa uma reação fundamental:
Acetil-CoA → ACC → Malonil-CoA
Agora consigo enxergar um verdadeiro cruzamento metabólico:
ACC → malonil-CoA → CPT1
A ACC participa da formação do malonil-CoA, enquanto o malonil-CoA participa da regulação da entrada de ácidos graxos na mitocôndria através da CPT1.
Temos, portanto, uma conexão entre síntese de gordura e oxidação de gordura.
Existem diferentes isoformas de ACC, especialmente ACC1 e ACC2. Didaticamente, posso associar fortemente a ACC1 à lipogênese, enquanto a produção de malonil-CoA próxima à mitocôndria, relacionada à ACC2, possui importância na regulação da CPT1.
A fisiologia é mais complexa do que essa divisão, mas ela me ajuda a enxergar o sistema.
E então surge outra pergunta inevitável:
Quem regula a ACC?
AMPK: o estado energético entra na conversa
É aqui que encontro uma das moléculas mais importantes desta investigação:
AMPK — AMP-activated protein kinase.
A AMPK funciona como um importante sensor do estado energético celular.
Quando determinadas condições sinalizam baixa disponibilidade energética, a AMPK participa de uma reorganização metabólica que tende a reduzir processos anabólicos consumidores de energia e favorecer processos capazes de disponibilizá-la.
Um dos alvos dessa sinalização é justamente a ACC.
Quando a AMPK fosforila e inibe a ACC, podemos representar parte da cascata desta maneira:
AMPK ↑ → ACC ↓ → malonil-CoA ↓ → menor inibição da CPT1 → maior possibilidade de entrada de ácidos graxos na via oxidativa → β-oxidação
Esse é um dos momentos em que a bioquímica começa a ficar visual para mim.
Já não estou olhando simplesmente para “gordura no fígado”.
Estou enxergando uma sequência:
AMPK → ACC → malonil-CoA → CPT1 → mitocôndria → β-oxidação
Não considero isso uma chave absoluta de “ligado” ou “desligado”. Trata-se de uma rede regulatória dinâmica.
E existe outro lado dessa mesma rede.
SREBP-1c e ChREBP: quando o metabolismo favorece a síntese
Enquanto observo a maquinaria envolvida na oxidação dos ácidos graxos, preciso olhar também para o caminho que favorece sua produção.
O fígado é capaz de sintetizar ácidos graxos a partir do excesso de substratos energéticos.
Esse processo é chamado de lipogênese de novo.
Dois reguladores importantes aparecem aqui:
SREBP-1c e ChREBP.
De maneira simplificada, sinais relacionados à insulina podem favorecer programas envolvendo SREBP-1c, enquanto o metabolismo de carboidratos participa fortemente da regulação de ChREBP.
Esses fatores de transcrição aumentam a expressão de genes envolvidos na lipogênese, incluindo ACC e FASN — Fatty Acid Synthase.
Posso representar esse braço assim:
Excesso energético e sinais nutricionais → SREBP-1c / ChREBP → ACC + FASN → síntese de ácidos graxos → triglicerídeos → gotícula lipídica
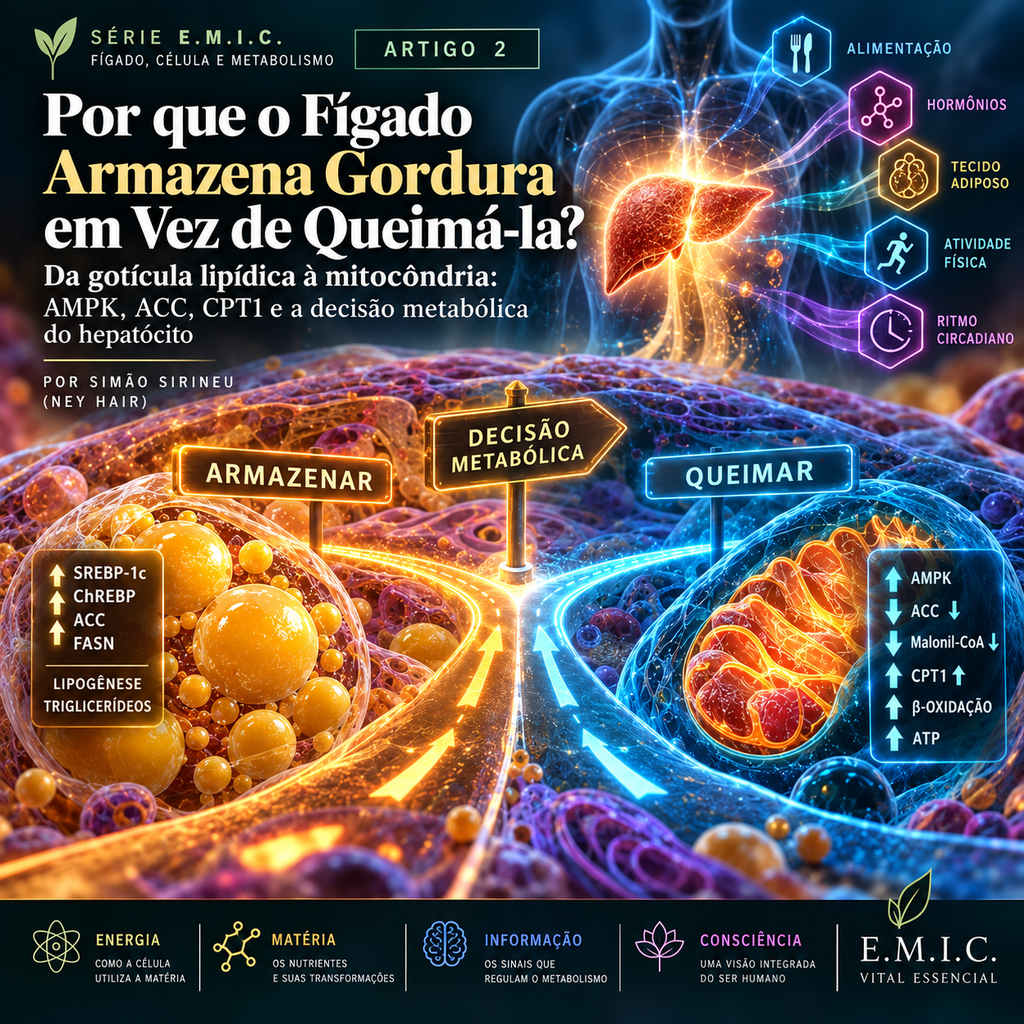
Agora consigo colocar os dois caminhos diante dos meus olhos.
De um lado:
SREBP-1c / ChREBP → ACC + FASN → lipogênese → triglicerídeos → armazenamento
Do outro:
AMPK → ACC ↓ → malonil-CoA ↓ → CPT1 → β-oxidação → utilização energética dos ácidos graxos
Essa é uma das imagens centrais que quero deixar neste artigo.
Não existem moléculas “boas” e “ruins” nessa história
Seria muito fácil olhar para essa cascata e concluir que AMPK é “boa” e ACC é “ruim”.
Eu não faço essa leitura.
A ACC possui funções fisiológicas fundamentais.
A síntese de lipídios também é necessária.
Triglicerídeos possuem função.
E a própria gotícula lipídica não é simplesmente uma bola de gordura indesejada.
Ela é uma organela dinâmica envolvida na homeostase lipídica e pode funcionar temporariamente como mecanismo de proteção celular, armazenando determinados lipídios em uma forma relativamente menos reativa.
Portanto, o problema não está simplesmente na existência da gotícula.
O que começo a enxergar é um desequilíbrio persistente entre entrada, produção, armazenamento, utilização e saída de lipídios.
Essa palavra — equilíbrio — será recorrente em toda a minha leitura E.M.I.C.
A aparente contradição da resistência à insulina
Durante essa investigação surgiu uma pergunta interessante.
Se muitas pessoas com alterações metabólicas apresentam resistência à insulina, por que o fígado continua produzindo gordura?
A resposta é que resistência à insulina não significa simplesmente que a insulina deixou de funcionar completamente em todas as vias do organismo.
Em determinados contextos, algumas ações da insulina relacionadas ao metabolismo da glicose tornam-se prejudicadas enquanto determinados sinais relacionados à lipogênese podem permanecer ativos.
Além disso, excesso de substratos, hiperinsulinemia e alterações no metabolismo da glicose podem continuar alimentando vias relacionadas a SREBP-1c e ChREBP.
Existe ainda outro elemento.
Quando o tecido adiposo apresenta resistência à ação antilipolítica da insulina, mais ácidos graxos podem ser liberados para a circulação.
Parte deles chega ao fígado.
Assim, o hepatócito pode enfrentar simultaneamente:
maior chegada de ácidos graxos + produção hepática de novos ácidos graxos + alterações na oxidação e exportação = maior pressão para armazenamento.
Isso mostra por que considero insuficiente dizer simplesmente:
“A pessoa comeu gordura e a gordura foi parar no fígado.”
A fisiologia é muito mais rica.
Entrando na β-oxidação
Quando o ácido graxo consegue alcançar a matriz mitocondrial na forma apropriada, começa uma sequência de reações conhecida como β-oxidação.
A cadeia do ácido graxo vai sendo progressivamente encurtada.
Durante esse processo são produzidos:
acetil-CoA, NADH e FADH₂.
Essas moléculas conectam a oxidação dos ácidos graxos à grande maquinaria energética mitocondrial.
Posso resumir:
Ácido graxo → β-oxidação → acetil-CoA + NADH + FADH₂ → ciclo do ácido cítrico e cadeia transportadora de elétrons → gradiente de prótons → ATP sintase → ATP
Aqui encontro algo que considero extraordinário.
A mesma matéria que poderia terminar armazenada dentro de uma gotícula lipídica também pode participar da geração de energia.
O destino depende do contexto metabólico e da regulação das vias.
Mais oxidação não significa automaticamente mais saúde
Outra simplificação que procuro evitar é imaginar que, se existe gordura demais, basta aumentar indefinidamente sua oxidação.
A mitocôndria pode inicialmente aumentar sua atividade diante de maior disponibilidade de substratos.
Isso pode fazer parte de uma resposta compensatória.
Entretanto, quando a sobrecarga metabólica permanece por longos períodos, também aumenta a pressão sobre a maquinaria oxidativa.
NADH e FADH₂ entregam elétrons à cadeia respiratória mitocondrial.
Esses elétrons percorrem estruturas organizadas na membrana mitocondrial interna, passando por complexos e transportadores até que o oxigênio participe da etapa final da cadeia.
Durante o metabolismo aeróbico, espécies reativas de oxigênio — as chamadas ROS — são naturalmente produzidas.
E aqui existe outra distinção importante.
ROS não são simplesmente inimigas da célula.
Em quantidades fisiológicas, espécies reativas também participam de processos de sinalização.
O problema aparece quando sua produção ultrapassa persistentemente a capacidade antioxidante e reparadora da célula.
Nesse momento começo a entrar em outro território:
estresse oxidativo.
A célula também possui seus sistemas de defesa
O hepatócito não fica passivamente exposto às espécies reativas.
Ele possui sofisticados sistemas de controle redox.
Entre eles estão SOD2, glutationa, glutationa peroxidases, peroxirredoxinas, catalase e redes regulatórias relacionadas a fatores como Nrf2.
Esses sistemas participam continuamente do equilíbrio entre produção de espécies reativas, neutralização, sinalização e reparo.
Mais uma vez chego à mesma palavra:
homeostase.
Meu objetivo não é imaginar um organismo sem espécies reativas.
Meu objetivo é compreender como a célula mantém o equilíbrio.
Quando esse equilíbrio se perde persistentemente, podem aparecer peroxidação lipídica, alterações em proteínas, danos de membrana, disfunções mitocondriais e sinais capazes de alcançar outras células.
É exatamente aí que a história começa a ultrapassar o simples armazenamento de gordura.
A célula também precisa fazer limpeza e reciclagem
Existe ainda outro processo que considero fascinante nessa investigação:
autofagia.
Autofagia é um conjunto de mecanismos utilizados pela célula para degradação, reciclagem e renovação de componentes.
Quando esse processo envolve componentes das gotículas lipídicas, encontramos o conceito de lipofagia.
Quando envolve seletivamente mitocôndrias comprometidas, encontramos a mitofagia.
Isso conecta diretamente duas estruturas que venho acompanhando desde o primeiro artigo:
gotícula lipídica ↔ mitocôndria.
A célula não possui simplesmente um compartimento que armazena gordura e outro que produz energia.
Existe comunicação entre organelas.
Existe transporte.
Existe sinalização.
Existe reciclagem.
Existe adaptação.
É justamente nesse ponto que minha leitura E.M.I.C. começa a ganhar ainda mais sentido.
Minha leitura E.M.I.C.: a célula não existe isoladamente
Quando olho somente para o fígado, corro o risco de imaginar que toda essa história começou dentro dele.
Não começou.
O hepatócito recebe matéria e sinais provenientes de uma rede muito maior.
Aquilo que comemos interfere nos substratos disponíveis.
O intestino participa da digestão e absorção.
O tecido adiposo armazena e libera ácidos graxos.
O pâncreas participa da sinalização hormonal.
O músculo utiliza substratos energéticos.
A circulação conecta tecidos.
O sistema nervoso participa da regulação energética.
Sono, atividade física, ritmo circadiano e estado metabólico interferem nessa rede.
E, no final, encontro novamente a célula.
Por isso existe uma frase que acompanha minha pesquisa:
“Você não é a tabela periódica. Você organiza os elementos da tabela periódica.”
Carbono continua sendo carbono.
Hidrogênio continua sendo hidrogênio.
Oxigênio continua sendo oxigênio.
Mas a vida não está simplesmente na existência isolada desses elementos.
Ela está na maneira como a matéria é organizada, nas estruturas que surgem dessa organização e nas relações bioquímicas estabelecidas continuamente.
Dentro da minha proposta teórica E.M.I.C., observo Energia, Matéria, Informação e Consciência como dimensões de uma leitura integrada do organismo.
Faço, porém, uma separação necessária: AMPK, ACC, CPT1, β-oxidação, mitocôndrias, autofagia e os demais mecanismos bioquímicos descritos neste artigo pertencem ao campo da bioquímica e da biologia celular. A dimensão da Consciência, dentro da E.M.I.C., pertence à minha construção teórica autoral e não deve ser apresentada como mecanismo estabelecido pela biologia molecular.
Para mim, deixar essa fronteira clara fortalece a proposta.
O segundo Mapa E.M.I.C. da Esteatose Hepática
Depois desse percurso, consigo organizar dois grandes caminhos.
CAMINHO DO ARMAZENAMENTO
Excesso persistente de substratos
↓
glicose + ácidos graxos
↓
hepatócito
↓
SREBP-1c / ChREBP
↓
ACC + FASN
↓
síntese de ácidos graxos
↓
triglicerídeos
↓
gotícula lipídica
↓
acúmulo persistente
↓
ESTEATOSE
Ao mesmo tempo:
CAMINHO DA OXIDAÇÃO
Ácido graxo
↓
acil-CoA
↓
CPT1 / sistema da carnitina / CPT2
↓
mitocôndria
↓
β-oxidação
↓
acetil-CoA + NADH + FADH₂
↓
cadeia respiratória
↓
PRODUÇÃO DE ATP
E entre os dois caminhos encontro uma importante ponte regulatória:
AMPK → ACC → malonil-CoA → CPT1 → β-oxidação
Essa sequência me ensinou algo fundamental:
Armazenar e oxidar gordura não são acontecimentos independentes. São partes de uma mesma rede metabólica regulada.
Da bioquímica para a alimentação molecular
Foi justamente depois de construir esse mapa que minha investigação mudou de direção.
Eu poderia simplesmente procurar uma lista de plantas tradicionalmente utilizadas para o fígado.
Preferi fazer o caminho inverso.
Em vez de perguntar:
“Qual planta é boa para o fígado?”
comecei a perguntar:
“Quais constituintes presentes nos alimentos e vegetais possuem ações moleculares estudadas sobre os pontos dessa cascata?”
A diferença é enorme.
Primeiro construo:
Fisiologia → célula → organela → via metabólica → alvo molecular → constituinte → fonte vegetal.
Somente depois chego à planta.
Foi seguindo esse caminho que comecei a encontrar constituintes vegetais investigados experimentalmente em pontos como:
AMPK, ACC, CPT1, PPARα, PGC-1α, Nrf2, autofagia e sinalização inflamatória.
Isso não significa afirmar que uma planta cura esteatose.
Significa reconhecer algo que considero fundamental para a ideia de alimentação molecular:
Os constituintes dos alimentos possuem ações bioquímicas e fisiológicas que podem ser estudadas. Descrever essas ações não transforma automaticamente o alimento em medicamento.
Proteínas possuem funções.
Fibras possuem funções.
Vitaminas possuem funções.
Minerais participam como cofatores.
Ácidos graxos possuem funções estruturais, metabólicas e sinalizadoras.
Polifenóis também podem interagir com sistemas biológicos.
Portanto, minha pergunta passa a ser muito mais precisa:
Qual molécula? Em qual matriz vegetal? Em qual concentração? Depois de qual processo de extração? Chegando a qual tecido? Interagindo com qual alvo? E sustentada por qual nível de evidência?
É essa pergunta que quero continuar perseguindo.
A próxima fronteira da investigação
Agora consigo compreender melhor por que o hepatócito pode armazenar gordura em vez de simplesmente oxidá-la.
Entrei na mitocôndria.
Encontrei AMPK.
Passei pela ACC.
Cheguei ao malonil-CoA.
Encontrei CPT1.
Entrei na β-oxidação.
Cheguei à cadeia respiratória.
E encontrei ROS, sistemas antioxidantes, autofagia e controle mitocondrial.
Mas uma pergunta permanece:
O que acontece quando a sobrecarga metabólica deixa de representar apenas armazenamento e começa a produzir sofrimento celular?
É nesse ponto que começaremos a encontrar lipotoxicidade, peroxidação lipídica, disfunção mitocondrial, sinais de perigo celular, inflamação, ativação de células estreladas hepáticas e, em determinados contextos, fibrose.
Esse será o próximo passo desta investigação.
No próximo artigo
Quando a Gordura Deixa de Ser Apenas Reserva: da Sobrecarga Mitocondrial à Inflamação e Fibrose Hepática
Depois disso, estaremos preparados para dar mais um passo: sair das vias moleculares e chegar aos constituintes vegetais.
E então poderei mostrar como uma planta entra ou sai da nossa investigação não simplesmente pelo seu nome ou pelo uso tradicional, mas pelas moléculas que fornece e pelas cascatas bioquímicas com as quais essas moléculas podem interagir.
Nota científica: Este conteúdo possui finalidade educacional e científica e não substitui avaliação, diagnóstico ou tratamento realizado por profissional de saúde. Os mecanismos bioquímicos foram apresentados de maneira didática e não representam toda a complexidade do metabolismo humano. MASLD e MASH são condições multifatoriais, e nenhuma via molecular isolada explica sua origem ou progressão. A E.M.I.C. — Energia, Matéria, Informação e Consciência — constitui uma proposta teórica autoral de Simão Sirineu. Os mecanismos de bioquímica e biologia celular apresentados no artigo devem ser diferenciados dessa construção conceitual e interpretados conforme as evidências científicas disponíveis.
Vital Essencial — Série E.M.I.C. | Fígado, Célula e Metabolismo
Simão Sirineu (Ney Hair)

