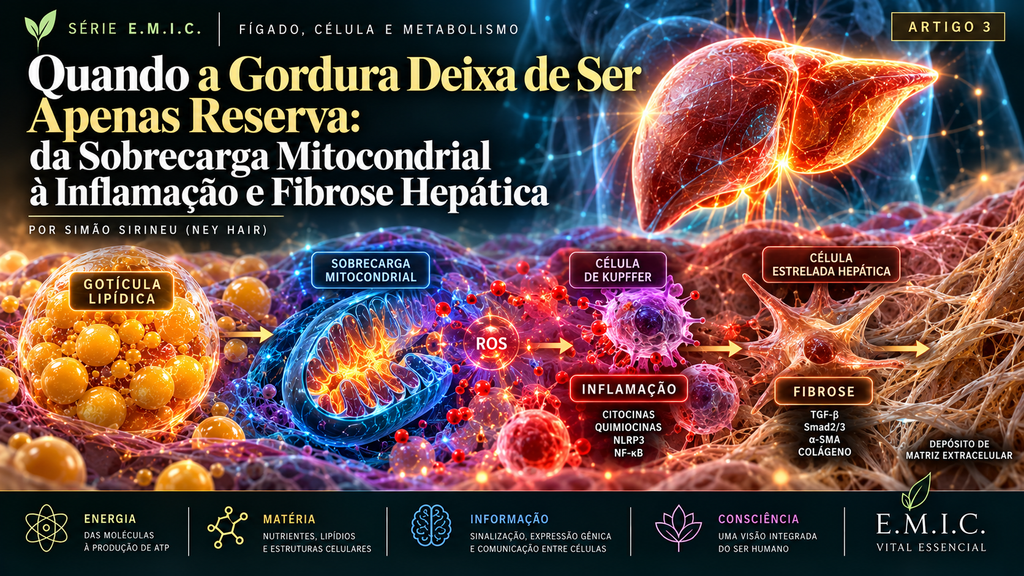
Série E.M.I.C. — Fígado, Célula e Metabolismo | Artigo 3
Por Simão Sirineu (Ney Hair)
No primeiro artigo desta série, entrei no hepatócito para compreender como os ácidos graxos podem ser transformados em triglicerídeos e armazenados dentro de uma estrutura fascinante: a gotícula lipídica.
No segundo artigo, avancei até a mitocôndria para investigar por que o fígado armazena parte dessa gordura em vez de utilizá-la como fonte de energia. Foi nesse percurso que encontrei moléculas e vias metabólicas como AMPK, ACC, malonil-CoA, CPT1 e β-oxidação.
Agora quero atravessar uma terceira fronteira.
O que acontece quando a sobrecarga metabólica deixa de representar apenas armazenamento e começa a comprometer o funcionamento do hepatócito?
Essa pergunta me conduziu a uma investigação ainda mais profunda, envolvendo mitocôndrias, espécies reativas de oxigênio, sistemas antioxidantes, membranas celulares, sinalização inflamatória e comunicação entre diferentes populações de células do fígado.
Foi nesse caminho que comecei a compreender uma distinção fundamental: acumular gordura, desenvolver inflamação e formar fibrose são acontecimentos relacionados, mas não são a mesma coisa.
A esteatose hepática não significa automaticamente que o fígado esteja inflamado ou desenvolvendo cicatrizes. Entretanto, em determinados contextos metabólicos, alterações persistentes podem favorecer uma sequência de respostas celulares que aumenta o risco de lesão e progressão da doença.
Para compreender essa transição, preciso começar por uma pergunta aparentemente simples.
A gotícula lipídica é uma reserva ou uma ameaça?
Durante muito tempo, a expressão “gordura no fígado” me pareceu suficiente para descrever a esteatose hepática.
Mas, ao estudar a organização do hepatócito, percebi que essa expressão esconde uma complexidade extraordinária.
A gotícula lipídica é uma organela especializada no armazenamento de lipídios neutros, principalmente triglicerídeos e ésteres de colesterol.
Sua existência é fisiológica.
O hepatócito utiliza essas estruturas para organizar reservas, regular o metabolismo lipídico e lidar com variações na disponibilidade de ácidos graxos.
Isso significa que armazenar triglicerídeos pode, em determinadas circunstâncias, representar uma resposta de proteção.
A célula consegue incorporar parte dos ácidos graxos em moléculas relativamente menos reativas, reduzindo sua permanência em formas potencialmente prejudiciais.
Portanto, não considero correto imaginar que toda gotícula lipídica seja, por definição, uma estrutura agressora.
O problema não é simplesmente armazenar gordura. O problema aparece quando a entrada, a produção, a utilização e a exportação de lipídios permanecem desequilibradas e começam a comprometer a homeostase celular.
Essa distinção abriu uma nova etapa da minha investigação.
Se o triglicerídeo armazenado pode funcionar temporariamente como uma forma de proteção, então preciso descobrir quais componentes do metabolismo lipídico realmente participam do sofrimento celular.
É aqui que encontro o conceito de lipotoxicidade.
Lipotoxicidade: quando determinados lipídios começam a comprometer a célula
Lipotoxicidade é o termo utilizado para descrever efeitos prejudiciais associados ao acúmulo ou à ação de determinadas espécies lipídicas em tecidos que não conseguem administrá-las adequadamente.
Isso não significa que todos os ácidos graxos sejam tóxicos.
Eles são indispensáveis à vida.
Participam da formação de membranas, da sinalização celular, do armazenamento energético e de inúmeras reações metabólicas.
Entretanto, quando existe excesso persistente de substratos e alterações nas vias responsáveis por sua utilização, determinadas espécies lipídicas podem favorecer disfunções celulares.
Entre as moléculas estudadas nesse contexto estão alguns ácidos graxos saturados, diacilgliceróis, ceramidas e outras espécies lipídicas bioativas.
Seus efeitos dependem da concentração, da localização, do tipo de molécula e das condições metabólicas da célula.
Algumas podem interferir na sinalização da insulina, na organização de membranas, no funcionamento do retículo endoplasmático e na atividade mitocondrial.
Outras participam de processos inflamatórios e de morte celular quando os mecanismos de adaptação deixam de ser suficientes.
Agora consigo compreender algo que considero essencial:
O tamanho de uma reserva de gordura não revela, sozinho, toda a intensidade do sofrimento metabólico do hepatócito.
Duas células podem apresentar acúmulo lipídico, mas responder de maneiras diferentes dependendo das espécies moleculares presentes e da capacidade de adaptação de suas organelas.
Essa observação me levou novamente à mitocôndria.
A mitocôndria tenta acompanhar a sobrecarga metabólica
No segundo artigo, acompanhei a entrada de ácidos graxos de cadeia longa na maquinaria mitocondrial através do sistema da carnitina, envolvendo CPT1 e CPT2.
Dentro da matriz mitocondrial, a β-oxidação participa da transformação desses ácidos graxos, produzindo acetil-CoA, NADH e FADH₂.
Essas moléculas alimentam processos envolvidos na produção energética.
Quando aumenta a disponibilidade de ácidos graxos, a mitocôndria pode responder elevando sua atividade oxidativa.
Essa resposta não é necessariamente prejudicial.
Em determinados estágios da sobrecarga metabólica, ela representa uma tentativa de adaptação.
O hepatócito procura utilizar parte do excesso de substratos que está recebendo.
Entretanto, a adaptação possui limites.
Quando a disponibilidade de nutrientes, a resistência à insulina, as alterações metabólicas e outros fatores permanecem desfavoráveis, a maquinaria mitocondrial pode enfrentar uma pressão prolongada.
Isso não significa que a mitocôndria simplesmente deixe de funcionar.
A realidade é mais complexa.
Podem coexistir aumento de determinadas atividades oxidativas, alterações na eficiência respiratória, desequilíbrio redox e comprometimento de mecanismos de manutenção mitocondrial.
Foi nesse ponto que precisei investigar o destino dos elétrons produzidos durante a oxidação dos nutrientes.
NADH, FADH₂ e a cadeia respiratória: para onde vão os elétrons?
A mitocôndria não produz ATP simplesmente porque recebe ácidos graxos.
Existe uma sequência organizada de reações bioquímicas.
Durante a β-oxidação e o ciclo do ácido cítrico, são produzidos transportadores de elétrons, especialmente NADH e FADH₂.
Esses elétrons alimentam a cadeia respiratória mitocondrial, formada por complexos proteicos e transportadores localizados na membrana mitocondrial interna.
Entre seus componentes estão os complexos I, II, III e IV, além da coenzima Q e do citocromo c.
O fluxo de elétrons permite que determinados complexos transportem prótons através da membrana mitocondrial interna.
Isso estabelece um gradiente eletroquímico.
A ATP sintase, também conhecida como complexo V, utiliza a energia desse gradiente para participar da síntese de ATP.
Posso representar essa sequência de maneira simplificada:
Ácidos graxos → β-oxidação → NADH e FADH₂ → cadeia respiratória → gradiente de prótons → ATP sintase → ATP
Essa é uma das expressões mais fascinantes da organização molecular da vida.
A matéria proveniente dos alimentos participa de transformações químicas capazes de sustentar a produção de energia utilizável pela célula.
Mas existe outro acontecimento importante durante o transporte de elétrons.
Parte do oxigênio pode ser reduzida de maneira incompleta, contribuindo para a formação de espécies reativas.
E é aqui que encontro as chamadas ROS.
Espécies reativas de oxigênio: inimigas ou mensageiras?
ROS é a sigla utilizada para espécies reativas de oxigênio.
Entre elas encontramos o ânion superóxido e o peróxido de hidrogênio.
Essas espécies podem surgir naturalmente durante o metabolismo aeróbico.
A cadeia respiratória mitocondrial, especialmente em determinados estados funcionais dos complexos I e III, constitui uma das fontes celulares de produção de espécies reativas.
Mas existe uma distinção que considero indispensável.
A presença de ROS não significa automaticamente doença ou dano celular.
Em condições fisiológicas, espécies reativas participam de mecanismos de sinalização.
Elas podem influenciar respostas adaptativas, expressão gênica e processos relacionados ao metabolismo e à defesa celular.
Portanto, não se trata de eliminar completamente as espécies reativas.
Trata-se de compreender sua regulação.
O problema aparece quando sua produção, localização ou persistência ultrapassa a capacidade de controle, neutralização e reparo do organismo.
Nesse contexto, podemos encontrar o chamado estresse oxidativo.
Essa condição pode favorecer alterações em proteínas, lipídios, membranas e componentes celulares.
É justamente aqui que minha investigação começa a sair da produção energética e entrar nos mecanismos de lesão.
Peroxidação lipídica: quando as membranas entram na história
As membranas celulares são estruturas organizadas principalmente a partir de lipídios e proteínas.
Elas não funcionam apenas como barreiras.
Participam da comunicação, do transporte, da organização de organelas e da manutenção de ambientes bioquímicos específicos.
Determinados lipídios presentes nessas membranas, especialmente ácidos graxos poli-insaturados, podem sofrer reações de oxidação.
Esse processo é conhecido como peroxidação lipídica.
Em situações de desequilíbrio oxidativo, reações em cadeia podem modificar lipídios de membrana e gerar produtos secundários reativos.
Entre os compostos frequentemente estudados como indicadores ou participantes desses processos estão o malondialdeído, conhecido como MDA, e o 4-hidroxinonenal, ou 4-HNE.
Essas moléculas podem participar de alterações em proteínas e de processos de sinalização associados ao estresse celular.
Agora consigo visualizar uma possível sequência:
Sobrecarga metabólica persistente → alterações oxidativas → aumento do estresse redox → peroxidação lipídica → comprometimento de componentes celulares
Entretanto, preciso fazer uma observação.
Essa sequência não acontece obrigatoriamente da mesma maneira em todos os hepatócitos.
A intensidade e as consequências dependem da composição lipídica, do estado das organelas, das defesas antioxidantes e de outros mecanismos celulares.
Mais uma vez, não encontro uma reação isolada.
Encontro uma rede.
O hepatócito possui uma sofisticada defesa antioxidante
Se espécies reativas fazem parte do metabolismo normal, a célula precisa possuir mecanismos capazes de controlar sua atividade.
E possui.
Entre os sistemas que venho estudando estão a superóxido dismutase mitocondrial, conhecida como SOD2, a glutationa, as glutationa peroxidases, as peroxirredoxinas e a catalase.
A SOD2 participa da conversão do superóxido em peróxido de hidrogênio.
O peróxido de hidrogênio, por sua vez, pode ser metabolizado por sistemas como catalase, glutationa peroxidases e peroxirredoxinas.
A glutationa participa de uma importante rede de controle redox.
Essas reações dependem de enzimas, cofatores, disponibilidade de substratos e sistemas de regeneração.
Portanto, não considero o equilíbrio antioxidante simplesmente uma questão de ingerir uma substância isolada.
O controle redox é uma atividade integrada da célula.
Existe ainda uma rede regulatória especialmente interessante.
Ela envolve o fator de transcrição Nrf2.
Nrf2: a resposta celular ao desafio oxidativo
Nrf2 participa da regulação da expressão de genes associados à proteção celular, ao metabolismo de compostos reativos e à manutenção do equilíbrio redox.
Em condições basais, sua atividade é controlada por mecanismos que envolvem proteínas como Keap1.
Diante de determinados sinais celulares, essa regulação pode ser modificada, favorecendo a atividade de Nrf2 e a expressão de genes de resposta adaptativa.
Entre os sistemas relacionados a essa resposta estão enzimas antioxidantes e proteínas envolvidas na manutenção da homeostase celular.
O que considero fascinante é perceber que a célula não responde ao ambiente apenas consumindo ou armazenando matéria.
Ela também modifica programas de expressão gênica.
Isso significa que uma alteração bioquímica pode influenciar quais proteínas serão produzidas e como a célula organizará sua resposta.
É um exemplo concreto de informação molecular participando da regulação da matéria e do metabolismo energético.
Dentro da minha leitura E.M.I.C., essa relação é especialmente importante.
Mas ainda existe outra pergunta.
O que acontece quando uma mitocôndria já está comprometida e seus sistemas de reparo não são suficientes?
É aqui que encontro os mecanismos de controle de qualidade celular.
Autofagia e mitofagia: a célula também precisa renovar suas estruturas
No artigo anterior, introduzi o conceito de autofagia.
Agora quero aprofundar sua importância.
A autofagia participa da degradação e reciclagem de componentes celulares.
Ela contribui para a renovação de estruturas, recuperação de materiais e adaptação a diferentes condições metabólicas.
Quando esse processo envolve seletivamente mitocôndrias, encontramos a mitofagia.
A mitofagia participa do controle de qualidade da população mitocondrial.
Mitocôndrias comprometidas podem ser reconhecidas e encaminhadas para degradação por mecanismos especializados.
Entre as vias investigadas nesse processo estão sistemas envolvendo PINK1 e Parkin, além de mecanismos mediados por receptores de mitofagia.
O objetivo fisiológico não é simplesmente destruir mitocôndrias.
É preservar uma população funcional de organelas.
A célula precisa equilibrar formação, manutenção, reparo e remoção de estruturas comprometidas.
Também existe a lipofagia, relacionada à mobilização de componentes das gotículas lipídicas através de mecanismos autofágico-lisossomais.
Isso amplia o mapa que comecei a construir desde o primeiro artigo.
A gotícula lipídica participa do armazenamento.
A mitocôndria participa da utilização energética.
Os lisossomos e a maquinaria autofágica participam da degradação e reciclagem.
Essas estruturas mantêm relações funcionais.
Quando seus mecanismos de comunicação e manutenção são prejudicados, a capacidade de adaptação do hepatócito também pode ser comprometida.
Quando componentes celulares passam a funcionar como sinais de perigo
Uma mitocôndria comprometida não representa apenas uma organela com menor eficiência energética.
Em determinadas condições de lesão, componentes celulares podem alcançar locais onde normalmente não deveriam estar presentes.
Entre eles estão moléculas associadas ao DNA mitocondrial.
Esses componentes podem atuar como sinais moleculares de perigo, frequentemente chamados de DAMPs — padrões moleculares associados a dano.
Os DAMPs podem participar da ativação de mecanismos de reconhecimento e sinalização relacionados à resposta imune inata.
Entre as vias estudadas nesse contexto está o sistema cGAS–STING, que pode responder à presença inadequada de DNA no citosol.
Outra estrutura importante é o inflamassoma NLRP3, um complexo multiproteico associado à ativação de determinadas respostas inflamatórias.
Entretanto, preciso separar cuidadosamente esses mecanismos.
cGAS–STING e NLRP3 não são a mesma via.
Também não são ativados obrigatoriamente em toda situação de lesão mitocondrial.
Sua participação depende do contexto celular, dos estímulos presentes e dos mecanismos envolvidos.
O ponto fundamental é compreender que o sofrimento de uma organela pode contribuir para a produção de sinais capazes de influenciar respostas inflamatórias mais amplas.
É nesse momento que a história deixa de pertencer apenas ao metabolismo energético.
Ela começa a envolver a comunicação entre diferentes células do fígado.
O hepatócito não sofre sozinho
Durante toda esta série, venho insistindo em uma ideia:
A célula não existe isoladamente.
Agora essa afirmação ganha uma expressão muito concreta.
O fígado não é formado exclusivamente por hepatócitos.
Existem outras populações celulares fundamentais para sua organização e funcionamento.
Entre elas estão células endoteliais sinusoidais, células de Kupffer, células estreladas hepáticas e diferentes populações de células imunológicas.
As células de Kupffer são macrófagos residentes do fígado e participam da vigilância imunológica, da remoção de componentes e da resposta a diferentes sinais.
Quando hepatócitos enfrentam determinadas formas de estresse ou lesão, podem liberar mediadores e sinais capazes de influenciar essas células.
A resposta inflamatória também pode envolver recrutamento de monócitos e outras populações imunológicas.
Nesse contexto, fatores de transcrição e vias de sinalização, como NF-κB, participam da regulação de diferentes mediadores inflamatórios.
Citocinas, quimiocinas e outros sinais passam a integrar a comunicação entre células.
Agora começo a enxergar uma transição importante:
Sobrecarga metabólica → estresse celular → sinais de perigo e mediadores → ativação de respostas imunológicas → inflamação hepática
Mas preciso reforçar uma distinção.
Nem toda esteatose evolui para inflamação importante.
Nem toda inflamação evolui para fibrose.
A progressão depende de múltiplos fatores metabólicos, genéticos, ambientais e celulares.
Da esteatose à esteato-hepatite: compreendendo MASLD e MASH
A terminologia científica atual ajuda a organizar essa discussão.
MASLD é a sigla de Metabolic Dysfunction-Associated Steatotic Liver Disease, utilizada para designar a doença hepática esteatótica associada à disfunção metabólica, conforme critérios clínicos específicos.
Já MASH significa Metabolic Dysfunction-Associated Steatohepatitis.
A MASH envolve uma condição de esteato-hepatite associada à disfunção metabólica, caracterizada por alterações histológicas de lesão hepatocelular e inflamação, podendo ou não apresentar fibrose.
Essas denominações substituíram, em grande parte da literatura atual, os termos NAFLD e NASH.
É importante compreender que não estamos falando simplesmente de dois nomes para a mesma coisa.
A presença de gordura no fígado não demonstra, por si só, a existência de esteato-hepatite.
E a avaliação da gravidade de uma doença hepática não pode ser realizada apenas observando uma molécula ou uma enzima isolada.
Existem critérios clínicos, laboratoriais, de imagem e, em situações selecionadas, histológicos que precisam ser considerados.
Meu interesse nesta série é compreender a base celular e molecular desses acontecimentos, sem transformar o mapa bioquímico em instrumento de diagnóstico.
E, ao estudar a MASH, encontrei outro personagem fundamental.
A célula estrelada hepática.
A célula estrelada hepática e o início da resposta fibrogênica
As células estreladas hepáticas, conhecidas pela sigla HSC, desempenham funções importantes no fígado.
Em condições fisiológicas, participam da organização do ambiente hepático e estão relacionadas, entre outras funções, ao armazenamento de vitamina A.
Entretanto, diante de determinados sinais persistentes de lesão e inflamação, essas células podem sofrer um processo de ativação.
Nesse estado, passam a apresentar características associadas à produção aumentada de componentes da matriz extracelular.
Entre os marcadores estudados nesse processo está a α-SMA, também chamada de alfa-actina de músculo liso, relacionada à expressão do gene ACTA2.
Outro elemento importante é o colágeno tipo I, associado, entre outros, ao gene COL1A1.
Agora a investigação começa a revelar a origem de uma alteração estrutural.
O problema já não envolve apenas metabolismo de ácidos graxos ou produção de espécies reativas.
Passa a envolver modificação da arquitetura do tecido hepático.
Essa transição é fundamental para compreender a fibrose.
TGF-β: uma das principais vias de sinalização fibrogênica
Entre os mediadores envolvidos na ativação das células estreladas hepáticas, o TGF-β, especialmente TGF-β1, ocupa uma posição importante.
Essa molécula participa de processos fisiológicos de regulação, reparo e remodelação tecidual.
Entretanto, quando determinados estímulos persistem, sua sinalização pode contribuir para respostas fibrogênicas.
Uma das vias estudadas envolve proteínas chamadas Smads.
De maneira simplificada, posso representar parte dessa cascata:
TGF-β1 → receptores de TGF-β → Smad2/3 → regulação da expressão gênica → produção de componentes da matriz extracelular
Nas células estreladas hepáticas ativadas, essa sinalização pode favorecer programas associados à produção de colágeno e outras proteínas da matriz.
Também encontro moléculas como TIMP1, envolvidas na regulação da degradação da matriz extracelular.
A fibrose não depende apenas de produzir mais colágeno.
Ela também envolve alterações no equilíbrio entre produção, organização e degradação dos componentes da matriz.
Isso me permite compreender a fibrose de maneira mais precisa.
Fibrose é um processo de remodelação tecidual caracterizado pelo acúmulo excessivo de matriz extracelular, especialmente colágeno, em resposta a diferentes formas de agressão persistente.
Não é simplesmente gordura endurecida.
Não é a transformação direta de uma gotícula lipídica em cicatriz.
É uma resposta biológica envolvendo diferentes populações celulares e complexas redes de sinalização.
Da alteração metabólica à alteração estrutural do fígado
Agora consigo reunir as principais etapas que investiguei.
Primeiro, existe uma alteração no equilíbrio do metabolismo lipídico.
O hepatócito recebe ou produz mais substratos do que consegue administrar adequadamente por suas diferentes vias.
Parte desses lipídios é armazenada em gotículas.
Em determinados contextos, espécies lipídicas bioativas, alterações mitocondriais, estresse oxidativo e outros mecanismos podem favorecer lesão celular.
Essa lesão pode gerar sinais que alcançam células imunológicas e outras populações presentes no fígado.
Quando respostas inflamatórias e fibrogênicas persistem, células estreladas hepáticas podem ser ativadas.
A produção e a remodelação da matriz extracelular tornam-se alteradas.
Em alguns indivíduos, isso pode resultar em fibrose progressiva.
Posso organizar a sequência didaticamente:
Desequilíbrio metabólico persistente → acúmulo lipídico e possíveis espécies lipotóxicas → estresse e lesão hepatocelular → sinais inflamatórios → ativação de células estreladas → deposição excessiva de matriz extracelular → fibrose
Mas faço uma ressalva fundamental.
Essa sequência não representa uma evolução obrigatória, automática ou igualmente linear em todas as pessoas.
A doença hepática esteatótica possui trajetórias variadas.
Existem indivíduos que permanecem com esteatose sem desenvolver esteato-hepatite avançada.
Existem processos que podem regredir quando as condições metabólicas e os fatores envolvidos são modificados.
E existem situações em que a fibrose progride e exige acompanhamento especializado.
Compreender a biologia desses mecanismos não significa prever o destino clínico de uma pessoa.
O terceiro Mapa E.M.I.C.: do metabolismo à comunicação entre células
Depois de percorrer essa investigação, consigo organizar um terceiro mapa.
PRIMEIRO TERRITÓRIO — SOBRECARGA METABÓLICA
Maior disponibilidade de substratos, alterações na lipogênese, oxidação e exportação de lipídios.
SEGUNDO TERRITÓRIO — ADAPTAÇÃO E ESTRESSE MITOCONDRIAL
β-oxidação, cadeia respiratória, alterações na produção de espécies reativas e na eficiência metabólica.
TERCEIRO TERRITÓRIO — EQUILÍBRIO REDOX
SOD2, glutationa, glutationa peroxidases, peroxirredoxinas, catalase e sinalização envolvendo Nrf2.
QUARTO TERRITÓRIO — CONTROLE DE QUALIDADE CELULAR
Autofagia, lipofagia, mitofagia e manutenção das organelas.
QUINTO TERRITÓRIO — COMUNICAÇÃO INFLAMATÓRIA
Sinais de perigo celular, DAMPs, NF-κB, NLRP3, cGAS–STING, células de Kupffer e outras populações imunológicas.
SEXTO TERRITÓRIO — REMODELAÇÃO E FIBROSE
Células estreladas hepáticas, TGF-β, Smad2/3, α-SMA, COL1A1, TIMP1 e matriz extracelular.
Esses seis territórios não são compartimentos isolados.
Eles se comunicam.
Uma alteração no metabolismo pode modificar o funcionamento mitocondrial.
O estado mitocondrial pode influenciar o equilíbrio redox.
O equilíbrio redox pode participar da regulação de respostas celulares.
A qualidade das organelas pode influenciar a liberação de sinais de perigo.
A inflamação pode modificar o comportamento de diferentes células.
E a comunicação persistente entre essas células pode contribuir para alterações estruturais do tecido.
O que começou como uma pergunta sobre uma gotícula de gordura terminou revelando uma rede de comunicação molecular, celular e tecidual.
Minha leitura E.M.I.C.: não somos partes isoladas
É nesse ponto que retorno a uma reflexão que acompanha minha trajetória de estudos.
“Você não é a tabela periódica. Você organiza os elementos da tabela periódica.”
Essa frase representa uma das bases da minha maneira de observar o organismo.
O carbono que participa da formação de um ácido graxo também pode integrar moléculas envolvidas na produção energética.
O oxigênio que participa da respiração celular também está relacionado à formação de espécies reativas.
O fósforo integra moléculas fundamentais para transferência energética e sinalização.
O cálcio participa de processos de comunicação celular.
Os elementos químicos, isoladamente, não explicam a organização completa de um organismo vivo.
Preciso observar as moléculas que formam, as estruturas que constituem, as transformações que realizam e as informações bioquímicas que circulam entre células e tecidos.
Dentro da minha proposta teórica E.M.I.C., procuro integrar quatro dimensões:
Energia, Matéria, Informação e Consciência.
Na dimensão da Energia, observo as transformações bioenergéticas que sustentam a atividade celular.
Na dimensão da Matéria, observo os nutrientes, moléculas, membranas, organelas e estruturas que constituem o organismo.
Na dimensão da Informação, observo a sinalização molecular, a regulação enzimática, a expressão gênica e a comunicação entre células e sistemas.
Na dimensão da Consciência, desenvolvo uma reflexão autoral sobre a experiência subjetiva e a integração do ser humano, sem apresentar essa dimensão como uma propriedade molecular comprovada das células.
Faço questão de preservar essa distinção.
Os mecanismos de AMPK, CPT1, β-oxidação, Nrf2, autofagia, inflamação e fibrose pertencem ao campo da investigação científica em bioquímica e biologia celular.
A E.M.I.C. constitui minha proposta de organização e interpretação integrada desses conhecimentos, incluindo uma dimensão filosófica própria.
Para mim, essa separação não enfraquece a reflexão.
Ela estabelece a responsabilidade necessária para continuar investigando.
O que essa investigação me ensinou sobre alimentação molecular
Depois de atravessar esses três artigos, minha compreensão sobre alimentação ganhou uma profundidade ainda maior.
Quando observo um alimento, não vejo apenas uma quantidade de calorias.
Vejo matéria organizada.
Vejo carboidratos, proteínas, lipídios, fibras, vitaminas, minerais e inúmeros constituintes que podem participar de processos fisiológicos.
Também reconheço que alguns alimentos vegetais fornecem compostos bioativos, como diferentes classes de polifenóis, cuja interação com sistemas biológicos vem sendo investigada experimentalmente.
Mas não quero transformar essa observação em uma promessa simplista.
O fato de uma molécula apresentar determinada ação em cultura celular não significa que a ingestão de um alimento produzirá automaticamente o mesmo efeito no organismo humano.
Existem questões de digestão, absorção, metabolismo, biodisponibilidade, concentração, distribuição tecidual e segurança.
É justamente por isso que considero importante construir a investigação na ordem correta.
Primeiro compreendo o funcionamento fisiológico.
Depois identifico os pontos de regulação.
Em seguida procuro os constituintes moleculares que possuem evidências de interação com esses pontos.
Somente depois considero suas fontes vegetais e as condições necessárias para estudá-las.
Essa é a lógica que venho chamando de alimentação molecular.
Para mim, alimentação molecular é a compreensão do alimento e de seus constituintes como fornecedores de matéria, energia e moléculas bioativas que participam das vias fisiológicas do organismo.
Descrever essas interações em cascata biomolecular não transforma o alimento em medicamento: explica como seus componentes participam da nutrição, do metabolismo, da sinalização e da manutenção da homeostase.
Ao mesmo tempo, reconheço que a classificação regulatória de qualquer produto depende de sua composição, apresentação, finalidade e alegações, e não apenas do nome utilizado para descrevê-lo.
A ciência precisa orientar a linguagem.
E a linguagem precisa respeitar os limites da ciência.
Da cascata biomolecular à investigação dos constituintes vegetais
Agora chego a uma nova etapa desta série.
No primeiro artigo, procurei compreender como nasce uma gotícula lipídica.
No segundo, investiguei os mecanismos que participam da distribuição dos ácidos graxos entre armazenamento e oxidação.
Neste terceiro, acompanhei como determinados desequilíbrios podem envolver estresse mitocondrial, alterações redox, comunicação inflamatória e remodelação do tecido hepático.
Com isso, construí um mapa de alvos moleculares.
AMPK.
ACC.
CPT1.
PPARα.
PGC-1α.
SREBP-1c.
FASN.
Nrf2.
NF-κB.
NLRP3.
TGF-β.
Smad.
Esses nomes já não aparecem para mim como uma coleção desconectada de siglas.
Eles ocupam posições dentro de uma rede fisiológica.
E agora posso fazer uma pergunta que considero decisiva:
Quais moléculas presentes nos vegetais possuem ações experimentalmente estudadas sobre essas vias metabólicas e celulares?
Não quero começar escolhendo uma planta porque ela é tradicionalmente associada ao fígado.
Quero começar pela fisiologia.
Pela organela.
Pela via metabólica.
Pelo alvo molecular.
Pelo constituinte.
E somente depois chegar à fonte vegetal.
Essa inversão muda completamente a maneira de investigar.
Também me obriga a reconhecer diferenças entre evidências obtidas em laboratório, estudos com animais e ensaios clínicos realizados em seres humanos.
Uma ação molecular demonstrada merece ser descrita. Mas não pode ser automaticamente convertida em promessa de prevenção, tratamento ou cura de uma doença.
É com esse compromisso que pretendo avançar.
O próximo passo: quando a investigação chega às plantas
Depois de compreender os mecanismos de armazenamento, oxidação, estresse oxidativo, inflamação e fibrose, chegou o momento de investigar os constituintes presentes em alimentos e plantas.
E quero seguir uma regra muito clara.
Não vou procurar uma justificativa molecular para uma planta escolhida previamente. Vou procurar quais constituintes vegetais possuem evidências relevantes para os mecanismos que identifiquei.
Isso significa investigar classes de moléculas, alvos bioquímicos, níveis de evidência, biodisponibilidade e limitações dos estudos.
Também significa compreender que a presença de um constituinte em uma planta não garante sua permanência em um extrato ou sua disponibilidade no organismo.
O processamento pode modificar a composição.
A solubilidade pode influenciar a recuperação.
A concentração pode alterar o perfil de ação e segurança.
E os resultados observados em um modelo experimental não devem ser confundidos com efeitos clínicos comprovados.
Essa será a próxima fronteira da minha investigação.
Não se trata de descobrir uma planta milagrosa.
Trata-se de compreender como moléculas de origem vegetal podem participar de interações bioquímicas e fisiológicas, respeitando a complexidade do organismo vivo.
E é justamente essa complexidade que me faz continuar estudando.
Porque, quanto mais avanço dentro da célula, mais percebo que nenhuma molécula conta toda a história sozinha.
A vida acontece nas relações.
No próximo artigo da Série E.M.I.C.
Da Molécula à Planta: Como Investigo Constituintes Vegetais pelas Cascatas Biomoleculares
Depois de percorrer os mecanismos celulares envolvidos no metabolismo hepático, vou mostrar como podemos investigar constituintes vegetais a partir de alvos moleculares previamente identificados.
O caminho será da bioquímica para a botânica, e não o contrário.
Primeiro a fisiologia. Depois a molécula. Finalmente, a planta.
Referências científicas para aprofundamento
As publicações a seguir oferecem bases para os mecanismos bioquímicos e celulares discutidos neste artigo. A interpretação integrada apresentada ao longo do texto pertence à minha proposta autoral E.M.I.C.
1. Nomenclatura e classificação da doença hepática esteatótica
Rinella ME e colaboradores. A multisociety Delphi consensus statement on new fatty liver disease nomenclature. Hepatology, 2023.
https://doi.org/10.1097/HEP.0000000000000520
2. Fisiopatologia da doença hepática gordurosa metabólica
Friedman SL e colaboradores. Mechanisms of NAFLD development and therapeutic strategies. Nature Medicine, 2018.
https://doi.org/10.1038/s41591-018-0104-9
3. Lipotoxicidade e lesão hepatocelular
Neuschwander-Tetri BA. Hepatic lipotoxicity and the pathogenesis of nonalcoholic steatohepatitis: the central role of nontriglyceride fatty acid metabolites. Hepatology, 2010.
https://doi.org/10.1002/hep.23719
4. Mitocôndrias e metabolismo na doença hepática esteatótica
Begriche K e colaboradores. Mitochondrial adaptations and dysfunctions in nonalcoholic fatty liver disease. Hepatology, 2013.
https://doi.org/10.1002/hep.26226
5. Autofagia e metabolismo lipídico
Singh R e colaboradores. Autophagy regulates lipid metabolism. Nature, 2009.
https://doi.org/10.1038/nature07976
6. Ativação de células estreladas hepáticas e fibrose
Tsuchida T, Friedman SL. Mechanisms of hepatic stellate cell activation. Nature Reviews Gastroenterology & Hepatology, 2017.
https://doi.org/10.1038/nrgastro.2017.38
7. Mecanismos de fibrose hepática
Hernandez-Gea V, Friedman SL. Pathogenesis of liver fibrosis. Annual Review of Pathology, 2011.
https://doi.org/10.1146/annurev-pathol-011110-130246
Nota científica: Este artigo possui finalidade educacional e científica. Não constitui orientação para diagnóstico, prevenção ou tratamento de doenças. A esteatose hepática, a MASH e a fibrose possuem mecanismos multifatoriais, e sua avaliação exige critérios clínicos apropriados. As cascatas moleculares apresentadas foram simplificadas para fins didáticos. A E.M.I.C. — Energia, Matéria, Informação e Consciência — constitui uma proposta teórica autoral de Simão Sirineu e deve ser diferenciada dos mecanismos bioquímicos estabelecidos pela literatura científica.
Vital Essencial — Série E.M.I.C. | Fígado, Célula e Metabolismo
Simão Sirineu (Ney Hair)

